G белок ассоциированные рецепторы
Механизм проведения информационного сигнала с участием рецепторов, связанных с G-белками, состоит, по крайней мере, из 5 этапов.
Первый этаппередачи сигнала включает распознавание и связывание сигнальной молекулы специфическим рецептором плазматической мембраны клетки-мишени.
Второй этаппредставляет собой сложный процесс переноса информации с внешней поверхности плазматической мембраны клетки на внутреннюю, что приводит кG-белок-зависимой активации мембрано-связанных ферментов (например, аденилатциклазы или фосфолипазы С).
Третий этапэтого многоступенчатого каскада сопровождается образованием и повышением уровня в цитозоле одного или нескольких низкомолекулярных внутриклеточных посредников (цАМФ, цГМФ, ДАГ, ионы Са 2+ и т.д.).
Повышение уровня низкомолекулярных внутриклеточных посредников внутри клетки инициирует четвертый этаппроведения внешнего регуляторного сигнала – подключение ферментов, активность которых непосредственно регулируется низкомолекулярными внутриклеточными посредниками. Это, как правило, протеинкиназы, которые в свою очередь (пятый этаппроведения регуляторного сигнала) оказывают влияние на активность ключевых клеточных ферментов, определяющих суть ответной реакции клетки на полученный ею извне конкретный информационный сигнал. Активированные каталитические субъединицы некоторых протеинкиназ (например, цАМФ – зависимых) могут оказывать свое влияние непосредственно в цитозоле или транслоцироваться из цитоплазмы в ядро при различных функциональных состояниях клетки. Результатом внутриядерных процессов может быть активация или торможение клеточного цикла, а также синтеза белковых молекул.
Образование вторичных посредников – дело интегральных белков плазматической мембраны.
Первые этапы передачи сигнала с образованием вторичных посредников протекают с участием интегральных белков плазматической мембраны. В этом процессе участвуют 7 ТМС рецептор, Gбелок и фермент, способствующий образованию вторичного посредника.
С хематическое изображение структуры-адренэргического рецептора показана на рис слева. Этот рецептор является членом одного из подсемейств большого суперсемейства 7 ТМС рецепторов, включающего 3 подсемейства: 1) подсемейство-адренергического рецептора; 2) подсемейство секретиноподобных рецеторов;3)подсемейство метаботропнык глутаматных рецепторов. Это разделение основано на особенностях аминокислотных последовательностей этих рецепторов.
Представители подсемейства -адренергического рецептора составляют большинство 7-TMS рецепторов, идентифицированных к настоящему времени. Это подсемейство включает- и-адренергические рецепторы, рецепторы гистамина, серотонина, брадикинина, субстанции Р, ангиотензина, интерлейкина 8, тромбина, саматостатина, гликопротеиновых гормонов, ацетилхолина (М-холинорецепторм) и т.д.
-адренергический рецептор, связывающий катехоламиновые агонисты (адреналин, норадреналин и т.д.), состоит из 418 аминокислотных остатков. Его внеклеточный N-концевой домен имеет два участка (сайта) гликозилирования. Гидрофобные участки аминокислотной последовательности -адренергического рецептора образуют 7 трансмембранных а-спиральных сегментов, которые соединены между собой гидрофильными экстраклеточными и внутриклеточными петлями (последние содержат участки взаимодействия с G-белком).
Подсемейство секретиноподобных рецепторов.Это подсемейство включает пептидергические рецепторы секретина, глюкагона, вазоинтестинального пептида, паратирина, кальцитонина, соматолиберина и др. Эти рецепторы характеризуются достаточно высокой гомологией аминокислотной последовательности внутри подсемейства и низкой гомологией с рецепторами подсемейства-адренергического рецептора. Все представители подсемейства секретиноподобных рецепторов связаны с Gs-белком, активация которого лигандорецепторным комплексом приводит к увеличению внутриклеточного уровня цАМФ. Вместе с тем, известно, что наряду с активацией Gs-белка, рецепторы глюкагона, паратирина и кальцитонина активируют и другие G-белки, приводящие к увеличению внутриклеточного уровня Са 2 * и инозитолтрифосфата.
Подсемейство метаботропных глутаматных рецепторов.Метаботропные глутаматные рецепторы образуют третье, высокоспециализированное подсемейство 7-TMSрецепторов. Глутаматорецепторный комплекс активирует Gq-белок, что в конечном итоге приводит к стимуляции образования инозитолтрифосфата и мобилизации внутриклеточного Са 2 *. Поскольку увеличение внутриклеточного содержания последнего ведет к активации многих метаболических процессов в клетке эти рецепторы носят название метаботропных в отличие от ионотропных глутаматных рецепторов, являющихся лигандозависимыми ионными каналами. Метаботропные глутаматные рецепторы присутствуют в клетках центральной и периферической нервной системы, где участвуют в регуляции разнообразных функций в ответ на действие агониста L-глутамата.
 Метаботропные рецепторы характеризуются очень низкой степенью гомологии аминокислотной последовательности со всеми другими 7-TMS рецепторами. Эти рецепторы имеют значительно более высокую молекулярную массу по сравнению с типичными представителями других подсемейств 7-ТМSрецепторов.
Рис.11.5. Схема строения мембраносвязанного Gбелка
Второй участник передачи сигнала – G белки. Эти белки довольно широко представлены в клетке. Можно выделить по крайней мере 2 типаGбелков:
а) большие, состоящие из нескольких субъединиц, (как правило, гетеротримеры, состоящие из ,исубъединиц с молекулярной массой 42kDa, 35kDaи 10kDaсоответственно) обычно связаны с мембранами благодаря липидным компонентам (пальмитиновая кислота) ковалентно присоединяемым к белку после синтеза на рибосомах
б) низкомолекулярные, состоящие из одной полипептидной цепи (23 кДа), находятся в цитозоле
Все Gбелки обладают ГТФазной активностью (отсюда их название) и их конформация зависит от того, связаны ли они в данный момент с ГДФ или ГТФ. Эти белки в клетке играют роль своеобразных молекулярных «выключателей» многих биохимических процессов (см. раздел по синтезу белков).
 На рис.11.5 представлена схема строения мембраносвязанногоGбелка. Он состоит из 3 субъединиц,и. В обычном (неактивном) состоянии три субъединицы соединены вместе исубъединица связана с ГДФ.
 После присоединения гормона к 7 ТМС рецептору и взаимодействия сGбелком в последнем происходит замена ГДФ на ГТФ иGбелок диссоциирует с образованием свободнойсубъединицы и димера субъединиц.субъединица и димерсубъединиц затем перемещаются по мембране и могут взаимодействовать с третьим мембраносвязанным участником передачи сигнала эффекторным белком. Им может быть фермент, катализирующий образование низкомолекулярных вторичных посредников.
Конечный эффект такого взаимодействия или активирование (Gs–белок) или ингибирование (Gi-белок) эффекторного белка. Продолжительность эффекта определяется ГТФазной активностью-субъединицы и после гидролиза ГТФ до ГДФ действие субъединиц прекращается и происходит реассоциация их в исходное тримерное состояние.
Рецепторы GPCRs (G-protein-coupled receptors) представляют собой интегральные трансмембранные белки, полипептидная цепь которых 7 раз пронизывает клеточную мембрану. При связывании лиганда с таким рецептором на внутренней стороне мембраны происходит активация одного или нескольких G-белков, представляющих собой гетеротримерные структуры, состоязие из трез субъединиц: Gα, Gβ и Gγ. Первая из этих субъединиц отвечает за связывание ГДФ/ГТФ. Как и в случае с белком Ras, активное состояние G-белка достигается при связывании ГТФ.
Связывание лиганда с GPCR-рецептором индуцирует высвобождение субъединицы Gα из состава гетеротримерного комплекса, которая далее осуществляет активацию ряда цитоплазматических ферментов, таких как аденилатциклаза и фосфолипаза С-β (PLC-β), которые соответственно осуществляют цинтез циклического АМФ (цАМФ) и расщепление фосфатидилинозитолдифосфата (PIP2) с образованием диацилглицерола (ДАГ) и инозитолтрифосфата (IP3), являющихся вторичными мессенджерами способными стимулировать клеточную пролиферацию (Рис. 40).

Рис. 40 GPCR-зависимый механизм сигнализации (Weinberg, 2007)
Существуют сведения о том, что активированная форма Gα, в комплексе с ГТФ, способна активировать онкобелок Src. С другой стороны, две другие субъединицы гетеротримерного комплекса G-белка (Gβи Gγ) способны активировать другие митогенные сигнальные белки, такие как PI3K. Способность рецепторов GPCR активировать митогенные сигнальные механизмы указывает на то, что нарушения в данном механизме сигнализации может играть важную роль в патогенезе неопластических заболеваний. В Таблице 4 приведены примеры GPCR-рецепторов и G-белков, участвующих в патогенезе различных форм рака.
Так, например, мелкоклеточная карцинома легких (small-cell lung cancer, SCLC), наиболее часто встречающаяся у курильщиков, секретирует большое количество факторов, сходных по природе и свойствам с нейропептидами. Некоторые формы рака легких могут одновременно секретировать бомбезин (также известный как гастрин-релизинг пептид, ГРП), брадикинин, холецистокинин, гастрин, нейротензин и вазопрессин. В тоже время, клетки рака легких экспрессируют соответствующие GPCR-рецепторы, способные распознавать и связывать данные пептиды, что приводит к формированию аутокринных сигнальных петель.
Таблица 4 Рецепторы GPCR и G-белки, участвующие в патогенезе различных форм рака (Marinissen, Gutkind, 2001)
| G-белок или GPCR | Тип опухоли |
| Мутации, приводящие к активации G-белков: Gαs Gαi2 | Тиреоаденомы и карциномы; аденома гипофиза Опухоли яичников и коры надпочечников |
| Мутации, оказывающие влияние на GPCR-рецепторы: Рецептор тиреоидных гормонов Рецептор ФСГ Рецептор ЛГ Рецептор холецистокинина-2 Ca 2+ -зависимый рецептор | Тиреоаденомы и карциномы Опухоли яичников Гиперплазии клеток Лейдига Колоректальный рак Различные неоплазии |
| Аутокринная/паракринная активация: Рецептор нейромедина В Рецептор нейротензина Рецептор гастрина Рецептор холецистокинина | Рак легких Рак простаты и рак легких Рак желудка и рак легких Опухоли поджелудочной железы, ЖКТ и легких |
| GPCR-рецепторы вирусного происхождения: Вирус саркомы Капоши (HHV-8) Herpesvirus saimiri Jaagsiekte sheep retrovirus | Саркома Капоши Лейкемии и лимфомы приматов Карцинома легких овец |
В клетках тиреоаденомы и тиреокарциномы часто наблюдается наличие точечной мутации в гене рецептора тиреотропина (thyroid-stimulating hormone, TSHR), приводящей к конститутивной экспрессии данного рецептора. Результатом такой активации является индукция митогенетических сигнальных каскадов в эпителиальных клетках щитовидной железы. В целом, порядка 10 из 17 генов генома человека, кодирующих Gα-субъединицы способны функционировать как онкогены в определенных типах клеток в различных типах опухолей.
2.11 Фактор NF-κB
Сигнальная система, действующая на основе факторов транскрипции класса NF-κB вносит существенный вклад в патогенез многих типов рака. Впервые важность данного сигнального механизма в патогенезе опухолевой болезни была показана при открытии онкогена rel быстро трансформирующего ретровируса, ответственного за развитие ретикулоэндотелиоза (форма В-клеточной лимфомы). Дальнейшие исследования факторов транскрипции, ответственных за регуляцию экспрессии иммуноглобулинов, показали, что Rel относится к семейству факторов транскрипции NF-κB, формирующих в цитоплазме гомо- и гетеродимеры.
Наиболее распространенной формой NF-κB является гетеродимер, состоящий из субъединиц р65 и р50. Как правило, NF-κB находится в цитоплазме в изолированной форме, связанный с белком IκB (ингибитор NF-κB) (Рис. 41).
Находясь в таком состоянии сигнальный механизм NF-κB «выключен». При поступлении сигнала со стороны клеточной поверхности IκB подвергается фосфорилированию, что приводит к его быстрой деградации, подобно тому, как это происходит с β-катенином при его фосфорилировании GSK-3β. В результате происходит высвобождение NF-κB, который далее мигрирует в ядро клетки, где он активирует экспрессию порядка 150 генов.

Рис. 41 Сигнальный механизм NF-κB (Weinberg, 2007)
Киназа, осуществляющая фосфорилирование IκB (IKK), также активируется посредством целого ряда сигнальных факторов, таких как фактор некроза опухоли-α (ФНО-α) и интерлейкин-1β (внеклеточные факторы, участвующие в механизме развития воспалительной реакции), липополисахарид (фактор бактериальной инфекции), активные формы кислорода (АФК), противоопухолевые лекарственные средства, а также ионизирующие излучения. В контексте онкогенеза, NF-κB оказывает существенное влияние на жизнеспособность клеток, а также их способность к пролиферации. При проникновении в ядро факторы NF-κB осуществляют индукцию экспрессии антиапоптозных генов, таких как Bcl-2, IAP-1 и -2. Кроме того, NF-κB обладает митогенетическим действием за счет индукции экспрессии генов myc и циклина D1, участвующих в регуляции клеточного цикла. Таким образом, фактор NF-κB способен обеспечивать защиту раковых клеток от апоптоза и, с другой стороны, стимулировать их пролиферацию.
В клетках большинства типов раковых опухолей сигнальный путь NF-κB конститутивно активирован. Так, например, в клетках рака молочной железы NF-κB-зависимая сигнализация весьма активна. Однако, механизм такой активации до сих пор полностью не выяснен. Полагают, что NF-κB играет наиболее важную роль в процессе малигнизации лимфоцитов. Показано, что ген REL кодирующий одну из субъединиц NF-κB подвергается амплификации примерно в 1/4 случаев диффузных крупных В-клеточных лимфом, что приводит к 4 – 35-кратному повышению его экспрессии. В клетках Т- и В-клеточных лимфом, а также в клетках меланомы имеют место транслокации, затрагивающие локус NFKB2. Кроме того, нарушения данного сигнального механизма наблюдаются на ранних стадиях предмалигнизации (Рис. 42).

Рис. 42 Иммуногистохимическое окрашивание препарата ранней стадии рака шейки матки. Коричневым цветом показаны области, в которых происходит фосфорилирование IκBи активация NF-κB (Nair, et al., 2003).
Дата добавления: 2018-02-08 ; просмотров: 233 ;
Читайте также:
- Ая пара черепных нервов. Проводящий путь обонятельного анализатора (рецепторы, нейроны, топография, корковые и подкорковые центры).
- Взаимодействие гормонов с рецепторами, сопряженными с G-белками, приводит к активации аденилатциклазной или инозитолфосфатной регуляторных систем.
- Вопрос №13 Сопряженные ВВП показатели результатов экономической деятельности в СНС. Методы их расчета и взаимосвязь.
- С G-белками в состоянии покоя связана молекула ГДФ.
- Сопряженные, самосопряженные и унитарные операторы в Гильбертовых пространствах.
- Сопряженные, самосопряженные и унитарные операторы и их свойства
- Сопряженные, самосопряженные и унитарные операторы и их свойства.
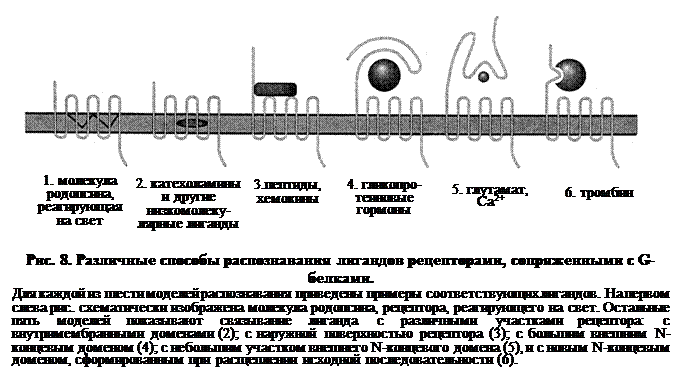
Большинство рецепторов относятся к семейству семикратно пересекающих мембрану серпентиновых (змееподобных) рецепторов. Эти рецепторы выполняют разнообразные биологические сигнальные функции. К ним относятся рецепторы вкусовых клеток. Сотни различных разновидностей рецепторов, находящихся на клетках обонятельных луковиц нашего носа передают информацию относительно присутствия лигандов-ароматов. Серпентиновые рецепторы имеют очень древнее происхождение. Их используют, например, клетки дрожжей, которые выделяют необходимые для спаривания полипептидные факторы и распознают их с помощью поверхностных рецепторов, представляющих собой все те же семикратно пересекающие мембрану серпентиновые рецепторы. Уникальная структура лиганд-связывающих участков серпентиновых рецепторов позволяет связывать лиганды различной природы и молекулярной массы.
Существуют сотни различных форм G-белковых рецепторов, а химическое разнообразие их лигандов чрезвычайно велико. Высокоспецифичные рецепторы этого семейства реагируют на:
ü небольшие молекулы, такие как катехоламины, пептиды и хемокины;
ü высокомолекулярные соединения, такие как гликопротеиновые гормоны;
ü световые импульсы;
ü летучие пахучие вещества.
Хотя общее строение G-белков одинаково, выявлены важные различия:
Ø различное расположение этих белков в липидном бислое;
Ø различия пространственной структуры рецепторов, что объясняет наличие различных
участков связывания и специфичность этих молекул.
Рисунок 8 иллюстрирует некоторые структурные различия рецепторов, сцепленных с G-белком, и объясняет широкую лигандную специфичность белков этого класса.
К началу 90-х годов было выделено более ста таких рецепторов, сопряженных с G-белком. К этому суперсемейству относятся рецепторы катехоламинов, ацетилхолина, серотонина, гистамина, ангиотензинов и др.
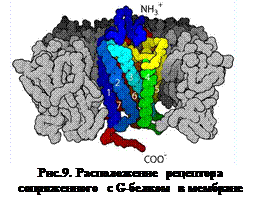
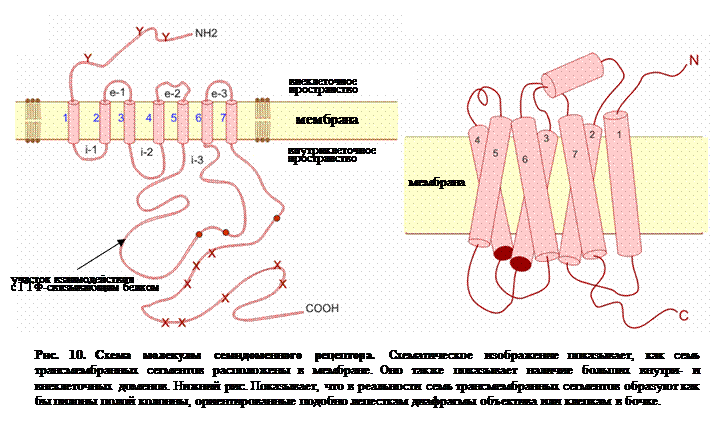
 Они образуют суперсемейство интегральных белков длиной 400-600 аминокислот. В составе цепочки имеются 7 высококонсервативных участков, образованных 22-28 гидрофобными аминокислотами (рис.9 и рис. 10). Данные гидрофобные участки образуют, вероятно, альфа-спирали и 7 раз прошивают плазматическую мембрану. Они разделены крупными гидрофильными сегментами, обращенными наружу и внутрь клетки. N-конец молекулы рецептора расположен во внеклеточном пространстве и имеет участки, по которым происходит N-гликозилирование. Предполагается, что сахарные участки участвуют в прикреплении N-конца рецептора к мембране. На C-концевом фрагменте, обращенном внутрь клетки, имеются участки, по которым может происходить фосфорилирование цАМФ-зависимой ГТФазы. Участок взаимодействия с ГТФ-связывающим белком находится в третьей цитоплазматической петле.
Отличительными структурными чертами серпентиновых рецепторов вообще является наличие внеклеточного N-конца и внутриклеточного С-конца, семи трансмембранных спиралей (ТМ), трех внеклеточных (е1-3) и трех внутриклеточных петель (i1-3) (см. рис. 10).
G-белки – это семейство белков, относящихся к GTPазам и функционирующих в качестве вторичных посредников во внутриклеточных сигнальных каскадах. G-белки названы так, поскольку в своём сигнальном механизме они используют замену GDP на GTP как молекулярный функциональный «выключатель» для регулировки клеточных процессов.
G-белки делятся на две основных группы:
Ø «большие» гетеротримерные – это белки с четвертичной структурой, состоящие из трех субъединиц:
Ø «малые» – это белки из одной полипептидной цепи, они имеют молекулярную массу 20-25 кДа и относятся к суперсемейству Ras (малые G-белки, регулируют деление клеток) малых GTPаз. Их единственная полипептидная цепь гомологична α-субъединице гетеротримерных G-белков.
Обе группы G-белков участвуют во внутриклеточной сигнализации.
Основной механизм сигнального действия G-белков.G-белок состоит из трех полипептидов:
ü α-субъединица, соединена с молекулой GTP и гидролизует ее,
ü β- и γ-субъединицы образуют димер, плотно соединенный нековалентными связями.
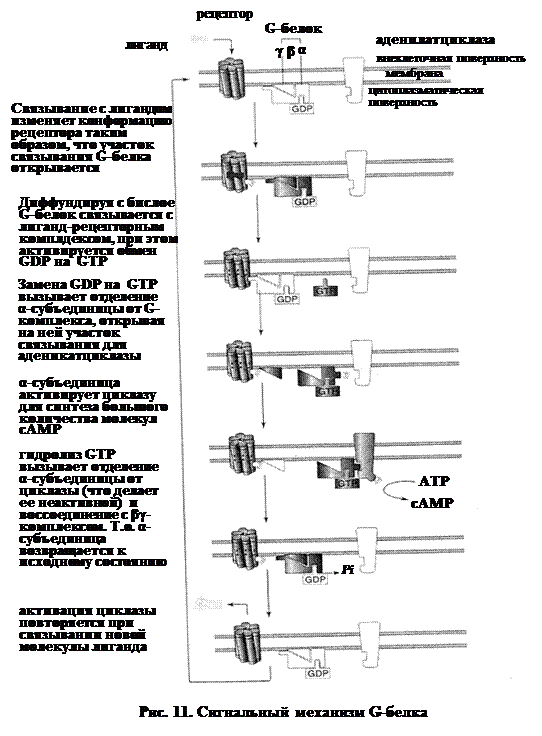
При соединении α-субъединицы с молекулой GDP и с βγ-субъединицами образуется неактивный тример, который прикрепляется к С-концевому участку рецептора. Связывание лиганда с этим рецептором приводит к изменению конформации цитоплазматического домена рецептора. Конформация α-субъединицы также изменяется, при этом ее сродство к GDP снижается, и GDP отщепляется от активного участка α-субъединицы.
GTP быстро связывается с активным участком, поскольку его внутриклеточная концентрация приблизительно в 10 раз превышает концентрацию GDP. После связывания GTP α-субъединица принимает активную конформацию и отщепляется как от рецептора, так и от βγ-субъединицы. GTP-связанная α-субъединица активирует различные эффекторные молекулы (например, аденилатциклазу, образующую сАМР). α-субъединица остается в активном состоянии до тех пор, пока входящая в ее состав GTPaзa не гидролизует GTP до GDP. Сразу после гидролиза GTP α- и βγ-субъединицы вновь соединяются и возвращаются к рецептору. Основные этапы этого процесса представлены на рис. 11.
Раньше считалось, что только α-субъединица G-белка взаимодействует с эффектором, а βγ-комплекс либо совсем не участвует в этом процессе, либо действует как отрицательный регулятор. Сейчас известно, что βγ-субъединица также может активировать эффекторные молекулы (например, мускариновые К + -каналы). Таким образом, и α-субъединица, и βγ-комплекс участвуют в регуляции клеточного ответа.
Эффекторные молекулы, взаимодействующие с G-белками. G-белки играют ключевую роль в активации каскада эффекторных молекул. К основным эффекторным молекулам, контролируемым G-белками, относятся:
ü фосфолипаза С (PLC)
ü фосфолипаза А2 (PLA2)
ü фосфоинозитид-3-киназа (РI3-киназа)
ü киназа β-адренорецептора (PARK)
Хотя в регуляции участвуют и α-субъединица, и βγ-комплекс, механизм регуляции специфичен для каждого эффектора. Например, существуют несколько различных форм аденилатциклазы. Каждая форма этой эффекторной молекулы активируется различными субъединицами G-белка: либо α, либо βγ, либо обеими субъединицами.
Физиологическая роль рецепторов, сопряженных с G-белками.Рецепторы, связанные с G-белками вовлечены в широкий круг физиологических процессов. Вот некоторые примеры:
1. зрение: опсины используют реакцию фотоизомеризации для превращения электромагнитного излучения в клеточные сигналы. Родопсин, например, использует превращение 11-цис-ретиналя в полностью-транс-ретиналь для этой цели
2. обоняние: рецепторы обонятельного эпителия связывают пахучие вещества (обонятельные рецепторы) и феромоны (вомероназальные рецепторы)
3. регуляция поведения и настроения: рецепторы в мозге млекопитающих связывают несколько различных нейромедиаторов, включая серотонин, дофамин, гамма-аминомасляную кислоту (ГАМК) и глутамат
4. регуляция активности иммунной системы и воспаления: хемокиновые рецепторы связывают лиганды, которые осуществляют межклеточную коммуникацию в иммунной системе; рецепторы, такие как гистаминовый рецептор, связывают медиаторы воспаления и вовлекают определенные типы клеток в воспалительный процесс
5. функционирование вегетативной нервной системы: как симпатическая, так и парасимпатическая нервная система регулируются посредством рецепторов, связанных с G-белками, ответственных за многие автоматические функции организма, такие как поддержание кровяного давления, частоты сердечных сокращений и пищеварительных процессов
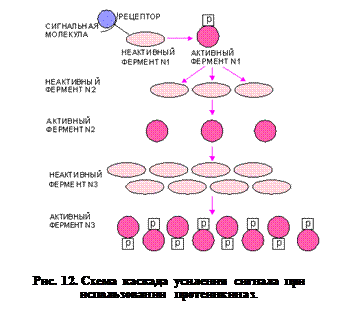
Усиление в каскадах передачи сигналов.В течение краткого периода своей активности аденилатциклаза производит несколько сотен молекул цАМФ (рис. 12). После того, как произведенные молекулы цАМФ активируют протеинкиназу А, она фосфорилирует и активирует фермент гликогенфосфорилазу, которая расщепляет гликоген до глюкозо-1-фосфата. Протеинкиназа А фосфорилирует также гликогенсинтазу, что приводит к ингибированию ее активности и, таким образом, предотвращает преобразование освобожденной глюкозы в гликоген. Эти два эффекта вместе обеспечивают мобилизацию глюкозы через расщепление гликогена, запасенного в печени.
В этом каскаде происходит огромное усиление сигнала. Одна молекула адреналина может вызвать активацию сотен α субъединиц G белков. Каждая из них в свою очередь будет активировать аденилатциклазу, которая в свою очередь синтезирует сотни молекул цАМФ. цАМФ активирует протеинкиназу А, которая модифицирует сотни молекул-мишений в клетке.
 |
Дата добавления: 2015-04-24 ; Просмотров: 2199 ; Нарушение авторских прав? ;
Нам важно ваше мнение! Был ли полезен опубликованный материал? Да | Нет
Если вы нашли ошибку, пожалуйста, выделите фрагмент текста и нажмите Ctrl+Enter.
