Гормоны производные аминокислот тирозина
Существуют три основных класса гормонов.
1. Белки и полипептиды, включая гормоны, секретируемые передней и задней долями гипофиза, поджелудочной железой (инсулин, глюкагон), околощитовидной железой (паратгормон) и многими другими.
2. Стероиды, секретируемые корой надпочечников (кортизол и альдостерон), яичниками (эстрогены, прогестерон), семенниками (тестостерон), плацентой (эстрогены, прогестерон).
3. Производные аминокислоты тирозина, секретируемые щитовидной железой (тироксин, трийодтироксин) и мозговым веществом надпочечников (адреналин и норадреналин). Неизвестны гормоны-полисахариды или гормоны-нуклеиновые кислоты.
Гормоны полипептидной или белковой природы хранятся в секреторных пузырьках, пока не будут востребованы.
Большинство гормонов организма являются белками или полипептидами. Эти гормоны бывают разных размеров: от маленьких полипептидов, содержащих 3 аминокислоты (тироксин-рилизинг фактор), до 200 аминокислот (гормон роста и пролактин). Обычно полипептиды, содержащие от 100 и более аминокислот, называют белками, а включающие менее 100 аминокислот — полипептидами.
Гормоны белковой и полипептидной природы синтезируются в шероховатом эндоплазматическом ретикулуме различных эндокринных клеток, как и прочие белки. Первоначально они синтезируются в виде крупных полипептидов, не обладающих биологической активностью (прегормоны), затем расщепляются в эндоплазматическом ретикулуме до более мелких прогормонов. Отсюда они транспортируются в аппарат Гольджи, где упаковываются в секреторные пузырьки. В ходе этого процесса ферменты пузырьков расщепляют прогормоны, формируя биологически активные гормоны и неактивные фрагменты. Пузырьки хранятся в цитоплазме, многие из них связаны с мембраной клеток до тех пор, пока не возникнет потребность в гормоне.
Секреция гормонов (как и неактивных фрагментов) осуществляется в том случае, когда секреторные пузырьки растворяются в мембране и содержащиеся в них гормоны попадают в интерстициальное пространство или напрямую в кровоток путем экзоцитоза.
Во многих случаях стимулом для экзоцитоза является увеличение концентрации ионов кальция в цитозоле клетки, вызываемое деполяризацией плазматической мембраны. В других случаях стимуляция поверхностных рецепторов эндокринной клетки приводит к увеличению циклического аденозинмонофосфата и последующей активации протеинкиназ, стимулирующих секрецию гормона. Пептидные гормоны водорастворимы, что позволяет им легко проникать в кровеносную систему, доставляющую их к тканям-мишеням.
Стероидные гормоны обычно синтезируются из холестерола и не депонируются. Химическая структура стероидных гормонов подобна холестеролу, в большинстве случаев они из него и синтезируются.
Стероидные гормоны жирорастворимы и состоят из трех циклогексановых и одного циклопентанового колец, объединенных в единую структуру. Обычно очень небольшие количества гормонов хранятся в стероид-продуцирующих эндокринных клетках, имеющих существенные запасы эфиров холестерола в вакуолях цитоплазмы. Но эти эфиры могут быть быстро мобилизованы для синтеза стероидов после стимуляции. Большое количество холестерола поступает в стероид-продуцирующие клетки из плазмы крови, хотя в этих клетках возможен синтез холестерола заново. Стероиды обладают высокой растворимостью в липидах, поэтому они легко диффундируют через мембраны клеток и попадают в интерстициальное пространство, а затем в кровь.
Гормоны-амины являются производными тирозина. Две группы гормонов являются производными тирозина: гормоны щитовидной железы и мозгового вещества надпочечников, формирующиеся под действием ферментов в цитоплазме железистых клеток. Тиреоидные гормоны синтезируются и хранятся в щитовидной железе, включаясь в макромолекулы белка тиреоглобулина, который размещается в больших фолликулах щитовидной железы. Секреция гормона осуществляется при условии отщепления аминов от тиреоглобулина, свободные гормоны выделяются в кровоток.
После попадания в кровь большинство гормонов щитовидной железы объединяются с белками плазмы, особенно с тирозин-связывающим глобулином, который медленно отдает гормон тканям-мишеням. Адреналин и норадреналин синтезируются в мозговом веществе надпочечников, которые в норме синтезируют почти в 4 раза больше адреналина, чем норадреналина. Катехоламины заключены в пузырьках, где хранятся до момента секреции. Подобно белковым гормонам, находящимся в секреторных гранулах, катехоламины высвобождаются из мозгового вещества путем экзоцитоза. Попав в кровоток, катехоламины могут присутствовать в плазме в свободном виде либо объединившись с другими веществами.
Так, PAF стимулирует агрегацию, хемотаксис, секреторную активность лейкоцитов и образование в них кислородных радикалов, адгезию лейкоцитов к клеткам эндотелия, проникновение лейкоцитов через слой эндотелия, сокращение гладкомышечных клеток, вызывает аритмии сердца и повышает оплодотворяющую способность спермы. Играет важную роль в патогенезе ряда заболеваний, таких как атеросклероз, воспаление, астма, аллергия, септический шок, тромбоз. Действует через Рц, сопряжённый с G-белками, который чаще всего экспрессируется клетками, синтезирующими PAF, что подразумевает ауто-/паракринные эффекты. Через Рц PAF могут также действовать структурные аналоги PAF, образующиеся при окислительной фрагментации полиненасыщенной ацильной группы, присоединённой к глицерину фосфолипидов (например, фосфа-тидилхолина) в положении 2. В таких структурных аналогах PAF в положении 2 глицерина находится короткий ацильный остаток, содержащий на конце метальную, гидроксильную, альдегадную или карбоновую группу.
Некоторые аминокислоты (глутаминовая кислота и глицин) и производные аминокислот (тирозина, триптофана, гистидина, глу-таминовой кислоты), а также ацетилхолин, формально сюда не относящийся, выступают в роли сигнальных соединений — гормонов, нейромедиаторов и паракринных регуляторов.
К ним относятся катехоламины и йодсодержащие гормоны щитовидной железы.
Катехоламины могут выступать в роли нейромедиаторов, паракринных регуляторов и гормонов. Для этих соединений характерно наличие катехоловой группировки (двух гидроксильных групп, присоединённых к соседним атомам углерода бензольного кольца) и декарбоксилированной боковой цепи. Катехоламины действуют через нескольких подтипов Рц, сопряжённых с G-белками.
Производные тирозина
Йодсодержащие гормоны щитовидной железы. Для тиреоидных гормонов характерно наличие двух связанных простой эфирной связью фенольных колец и замещение в 3,5,3′(5′) положениях йодом. При секреции количественно преобладает тетрайодтиронин, или тироксин (Т4), но с Рц тиреоидных гормонов преимущественно взаимодействует более активный трийодтиронин (Т3). Полагают, что адресную функцию в молекуле тиреоидного гормона выполняет боковая цепь и дийодированное кольцо А, а эффекторную функцию — моно- или дийодированное кольцо В. Т3 и Т4 действуют через ядерные Рц двух подтипов и играют важную роль в регуляции энергообмена, а также в развитии организма.
Производные триптофана. К ним относятся серотонин и мелатонин.
Серотонин нейромедиатор, действует через Рц двух типов — Рц-ионный канал (5-НТЗ) и несколько подтипов Рц, сопряжённых с G-белками.
Мелатонин выполняет гормональную и паракрин-ную функцию. Образующийся в шишковидном теле мелатонин подавляет продукцию гонадолиберинов в гипоталамусе и тем самым участвует в регуляции полового созревания, сезонной и диурнальной регуляции репродуктивной системы. Мелатонин важен для поддержания циркадных ритмов и стимулирует иммунную систему. У низших позвоночных регулирует окраску покровов в соответствии с освещённостью. Действует через Рц, сопряжённый с G-белками, и, возможно, через ядерные сиротские Рц ретиноидов ROR (3 подтипа).
Производные гистидина. Гистамин — паракринный фактор, участвующий в развитии воспалительной реакции, стимулирует сокращения гладкой мускулатуры кишечника и бронхов, оказывает мощный сосудорасширяющий эффект, стимулирует желудочную секрецию. Действует через Рц, сопряжённые с G-белками (несколько подтипов).
Глутаминовая кислота и ГАМК. И глутаминовая кислота, и её производное — у-аминомасляная кислота (ГАМК) — нейромедиаторы.

Окончание табл. 27

Чувствительность рецепторов и активность ферментов, расщепляющих гормоны, может меняться при нарушениях обмена, изменениях физико-химических параметров организма (температура, кислотность, осмотическое давление), концентрации важнейших субстратов, при выполнении мышечной работы, заболеваниях, введении лекарственных средств. Следствием этого является усиление или ослабление влияния гормонов на соответствующие органы.
Механизмы действия гормонов разнообразны, среди них можно выделить главные, присущие большинству гормонов:
1) гормоны влияют на скорость синтеза ферментов, ускоряя или замедляя его: в органах-мишенях повышается или снижается концентрация определенных ферментов, изменяя скорость ферментативных реакций;
2) гормоны влияют на активность ферментов в этих органах, являясь:
– активаторами ферментов – скорость ферментативных реакций повышается;
– ингибиторами ферментов – скорость ферментативных реакций снижается;
3) гормоны влияют на проницаемость клеточных мембран в отношении определенных химических соединений: в клетки поступает больше или меньше субстратов для ферментативных реакций, что тоже обязательно сказывается на скорости химических процессов.
Таким образом, основные действия гормонов направлены на регуляцию скорости химических реакций в клетках и оказывают влияние на физиологические функции.
По химическому строению гормоны делятся на группы.
Гормоны белковой природы (белки и полипептиды):
– кальцитонин щитовидной железы,
– гормон паращитовидных желез,
– гормоны поджелудочной железы.
Гормоны – производные аминокислоты тирозина:
– йодсодержащие гормоны щитовидной железы,
– гормоны мозгового слоя надпочечников.
Гормоны стероидного строения:
– гормоны коры надпочечников,
– гормоны половых желез.
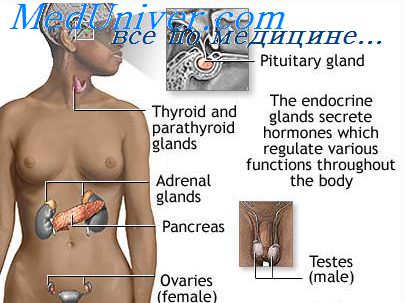
Синтез и выделение гормонов в кровь находятся под контролем нервной системы. В упрощенном виде взаимосвязь между эндокринной и нервной системами можно представить следующим образом. При воздействии на организм каких-либо внешних факторов или же при возникновении изменений в крови и в различных органах соответствующая информация передается по чувствительным нервам в гипоталамус (орган ЦНС). В ответ на полученную информацию вырабатываются гормоны гипоталамуса, которые затем поступают в гипофиз и стимулируют или тормозят в нем секрецию гормонов передней доли гипофиза. Гормоны выделяются из гипофиза в кровь, переносятся в железы внутренней секреции и вызывают в них синтез и секрецию соответствующих гормонов, которые далее воздействуют на органы-мишени. Таким образом в организме осуществляется единая нервно-гормональная, или нейрогуморальная, регуляция.
В частности, регуляция обмена углеводов может быть представлена следующим образом (в основе лежит саморегуляция).
Концентрация глюкозы в периферической крови относится к биологическим константам, т е. величинам, колебания которых не должны превышать определенные гомеостатические нормы. У здорового человека содержание глюкозы в состоянии относительного покоя находится в пределах 4,5-5,5 ммоль/л (80-120 мг%). Повышение уровня глюкозы выше 5,5 ммоль/л называется гипергликемией, падение ниже 3,3 ммоль/л – гипогликемией. От избыточных потерь глюкозы организм предохраняет функция почек: глюкоза, профильтровавшаяся в первичную мочу, реабсорбируется из почечных канальцев в кровь, если только ее содержание в крови не превышает 8,5 ммоль/л. Наличие глюкозы в моче называется глюкозурией.
Это означает, что более или менее значительное отклонение концентрации глюкозы в крови от нормальных пределов возбуждает механизмы, под влиянием которых происходит ее нормализация. Рассмотрим эти механизмы саморегуляции на примере гипогликемии, гипергликемии.
Ведущая роль в контроле содержания глюкозы в крови принадлежит гипоталамусу. Возбуждение гипоталамических центров приводит к активированию физиологических механизмов, способствующих нормализации уровня глюкозы в крови. К ним относятся возбуждение симпатического отдела нервной системы и усиление секреции катехоламинов мозговым слоем надпочечников, повышение продукции глюкагона а-клетками поджелудочной железы, а также активирование гипоталамических либеринов, под влиянием которых вырабатываются кортикотропин, глюкокортикоиды и соматотропин.
Гипогликемия – мощный стимулятор для усиления секреции катехоламинов и глюкагона. Катехоламины (адреналин, норадреналин и дофамин) попадают в периферическую кровь, где связываются с белком и циркулируют в связанном виде. Свободные катехоламины быстро разрушаются под влиянием ферментов. Катехоламины оказывают влияние на органы мишени через специфические адренорецепторы.
Для регуляции уровня глюкозы в крови преимущественное значение имеет адреналин. Он активирует распад гликогена в печени и мышцах. Влияние на гликоген осуществляется через фосфорилазы. В печеночных клетках при этом образуется избыток глюко-зофосфатов, а затем – свободной глюкозы, которая поступает в кровь и противодействует гипогликемии. В мышцах под влиянием адреналина происходит распад гликогена до глюкозы и молочной кислоты, которые частично захватываются гепатоцитами, и восполняются запасы гликогена.
Определенное влияние, схожее с адреналином, оказывает норад-реналин надпочечников и симпатических нервов. Однако интенсивность его влияния на углеводный обмен значительно меньше.
Секрецию глюкагона стимулирует гипогликемия, а также уменьшение содержания в крови жирных кислот и аминокислот. Существенное тормозящее влияние на секрецию глюкагона оказывает соматостатин, вырабатываемый в эндокринной части поджелудочной железы. Симпатический отдел нервной системы активирует секрецию глюкагона. Это создает дополнительный стимул для выделения его при гипогликемии. Ответная секреция глюкагона при значительном снижении уровня глюкозы в крови происходит быстро и в значительных пределах (в 4-5 раз).
Глюкагон оказывает выраженное гипергликемическое действие, которое делят на две фазы. Первая фаза – гликогенолиз, в основе которого лежит активирование фосфорилазы; т е. аналогично действию адреналина. Однако, в отличие от адреналина, глюкагон не действует на гликоген мышц, поэтому не вызывает повышения содержания молочной кислоты в крови. Первая фаза непродолжительна и зависит от количества гликогена, резервированного в печени. Вторая фаза гипергликемии – четкое влияние глюкагона обусловлено глюконеогенезом, т. е. новообразованием глюкозы из неуглеводных соединений. Эта фаза характеризуется менее высоким, но более длительным повышением концентрации глюкозы в крови.
Кортикотропин – глюкокортикоиды. Возбуждение гипоталамических нейросекреторных клеток при гипогликемии охватывает центры продукции кортиколиберина. По существу, значительное уменьшение уровня всегда является острым стрессом. Увеличенное образование и выделение в портальную систему гипофиза кортиколиберина неминуемо приводит к активированию секреции кортикотропина из передней доли гипофиза, а под влиянием кортикотропина стимулируется биосинтез глюкортикоидов в коре надпочечных желез. Основной глюкокортикоид человека – кортизол, который активно усиливает распад белка (кроме печени) и усиливает новообразование углеводов из неуглеводных компонентов. Главным субстратом глюконеогенеза служат аминокислоты, освобождающиеся из белков различных органов под влиянием тех же глюкокортикоидов. В результате в печени увеличивается количество гликогена, который поставляет глюкозу в кровь. Как видно, в отношении глюконеогенеза глюкокортикоиды действуют синергично (однонаправленно) с глюкагоном.
Соматотропин. Гипогликемия – мощный стимулятор секреции соматотропина. Его гипергликемическое действие объясняется уменьшением потребления глюкозы периферическими тканями. Следует также помнить, что анаболическое влияние соматотропина в белковом обмене требует участия инсулина, поэтому его длительная повышенная секреция приводит к истощению инсулина.
Саморегулирование четко выражено и при гипергликемических состояниях. Наиболее мощным фактором, противодействующим повышению уровня глюкозы в крови, является инсулин. Глюкоза – специфический стимулятор секреции этого гормона. Синтез инсулина происходит в (3-клетках поджелудочной железы. Вначале на рибосомах образуется препроинсулин – одиночный пептид из 104—110 аминокислотных остатков. По мере дальнейшего прохождения по шероховатой эндоплазматической сети часть молекулы отщепляется и остается проинсулин из 81-86 аминокислотных остатков. В результате этого расщепления образуются инсулин, частично расщепленный проинсулин и С-пептид (часть молекулы препроинсулина). Все эти гормональные формы депонируются в секреторных гранулах (3-клеток путем полимеризации и комплек-сирования с цинком. В ответ на гипергликемию происходит двухфазное выведение гормона: первая быстрая (в течение 1 мин после действия стимула) и вторая – спустя 20-30 мин. В первой фазе секретируется инсулин, расположенный вблизи цитоплазматичес-кой мембраны, а во второй фазе происходит транспорт гранул инсулина по системе микротрубочек и микрофиламентов от аппарата Гольджи до цитоплазматической мембраны. Лишь затем гормон выводится из (3-клетки. Опосредуют влияние глюкозного стимула АМФ, метаболиты глюкозы и Са2 .
Поступивший в кровь инсулин циркулирует в двух формах – свободной и связанной с белками. Свободный инсулин действует на мышцы, жировую ткань, печень и мозг, а связанный – только на жировую ткань. Между связанным и свободным инсулином имеется динамическое равновесие: при гипергликемии увеличивается количество свободной фракции и уменьшается количество связанного гормона, а при недостатке глюкозы преобладает связанный инсулин.
Усилению секреции инсулина способствуют также соматотропин, кортикотропин, глюкокортикоиды, т е. гормоны с гипергликемическим эффектом.
Инсулин – единственный сахаропонижающий гормон, влияние его многопланово. Он вызывает повышение проницаемости цитоплазматических мембран клеток-мишеней к моносахаридам, особенно к глюкозе. В печени инсулин активирует глюкокиназу, в связи с чем возрастает количество глюкозо-6-фосфата, соответственно усиливается метаболизм углеводов. В печени наиболее интенсивно происходит глюкогенез, поэтому увеличивается содержание гликогена. Инсулин подавляет также распад печеночного гликогена (гликогенолиз), а также тормозит глюконеогенез. Наконец, инсулин способствует превращению углеводов в жиры и в конечном итоге определяет анаболические процессы в организме.
Все железы внутренней секреции функционируют согласованно и оказывают друг на друга взаимное влияние. Введение в организм извне гормонов не только сказывается на функции железы, вырабатывающей вводимый гормон, но и может оказать негативное воздействие на состояние всей нервно-гормональной регуляции в целом.
Неквалифицированное вмешательство в регуляцию этой сложной системы оказывает негативное влияние на функции всего организма. Поэтому использование гормональных препаратов в качестве допингов опасно для здоровья спортсменов.
Только специалисты могут грамотно провести коррекцию гормонального статуса: эндокринолог, андролог, гинеколог-эндокринолог (см. «Актуальные проблемы женского спорта»).
При подозрении на сбои в работе какой-либо железы внутренней секреции необходимо детально исследовать ее функции. Контроль за уровнем глюкозы (а значит, косвенно, и за работой инсу-лярного аппарата) до нагрузки и во время нагрузки стал рядовым фактом. Уровень развития современного спорта настоятельно требует введения, также, в повседневную практику исследований уровня гормонов щитовидной железы, половых гормонов.
Кроме того, долгие годы существовало убеждение, что выделение кодируемой информации является спецификой тканей эндокринной системы. В настоящее время в этой области науки достигнут значительный прогресс, свидетельствующий о том, что практически все ткани участвуют во взаимном обмене информацией между собою, а число химических сигналов, выделяемых тканями и кодирующих передаваемую информацию, намного превосходит число известных гормонов.
Если вы нашли ошибку, пожалуйста, выделите фрагмент текста и нажмите Ctrl+Enter.
